まれに自然発生する突然変異は、ヒトにおいて、がんの発症に対するほぼ完璧な抵抗力(ラロン症候群)、生理的レベルを超える筋骨格の強さ(ミオスタチン遺伝子変異)、および寿命と健康寿命の延長(IGF1R遺伝子変異)など、並外れた表現型の根底にあることが分かっている。
エンディコット研究室では、定量的プロテオミクス、生化学、顕微鏡観察、細胞生物学、マウス研究を組み合わせ、長寿と非感染性加齢関連疾患に対する抵抗力を司る基本的な生物学的メカニズムの解明に取り組んでいます。現在進行中の主要プロジェクトは以下のとおりです。
(1)ミオスタチンに対する安全で安価な免疫療法を開発し、健康的な体組成を促進し、身体能力を向上させる。
(2)シャペロン介在オートファジーによる選択的タンパク質分解の制御機構を解明する。これは、ヒトのラロン症候群(がん耐性のある人)をモデル化したマウスを含む、長寿でがんに抵抗性のあるマウスにおいて有益なタンパク質変化をもたらす細胞内リサイクルプログラムである。
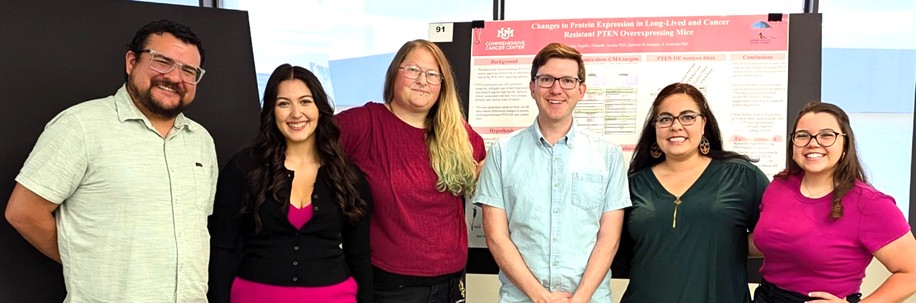
エンディコット研究所、2025年夏
私たちは、希少な遺伝子変異が、がん、肥満・糖尿病、脂肪肝、サルコペニアなどの加齢関連疾患に対する抵抗力をどのように付与するのか、その生物学的メカニズムを研究しています。そして、これらの知見を活用し、それらの効果を再現する安全で拡張性の高い介入法の開発を目指しています。
私たちは現在、2つの有益な機能喪失変異(ghrとgdf8)に注目しています。
1. GHR。医師、科学者、一般の報道機関は皆、ラロン症候群(ghrの機能喪失変異)の稀な患者が、同様の環境条件で生活している近親者(いとこなど)の癌発生率が正常であるにもかかわらず、自然発生的な癌をほとんど発症しないという最近の発見に困惑している。これは、LSがヒトの癌発症に対する抵抗力の遺伝的基盤を構成していることを強力に示しているが、LS患者の癌抵抗力につながる細胞メカニズムは不明である。LS患者は、癌抵抗力に加えて、成長ホルモン(GH)抵抗性小人症を呈する。これらの表現型は、ghrノックアウト(KO)マウス(LSの標準的なマウスモデル)にも反映されており、正常な同腹仔と比較して、成体サイズが50%減少し、癌発生率が低く、インスリン感受性が向上し、寿命が約20%延長している。これらの研究結果は、重要な疑問を提起する。すなわち、ghrの喪失の下流で、癌化の可能性を低下させる細胞および細胞内レベルの変化とは何か?
我々の最近の研究では、長寿で癌耐性のある3種類のマウス系統(ghrノックアウト、pou1f1変異体、PTEN過剰発現体を含む)が、シャペロン介在性オートファジー(CMA)と呼ばれる高度に選択的なタンパク質リサイクル機構を恒常的に活性化していることを発見した。CMAは、CIP2A12、MDM213、変異体TP5314、TPT115、HK216など、いくつかの癌原性タンパク質を分解し、その量を調節する。
我々(および他の研究者)は、CMAがプロテオームの一部を選択的に分解し、解糖、新規脂肪生成、翻訳、細胞質アセチルCoAの生成といった基本的な同化プロセスをダウンレギュレーションすること、そしてこれらの経路がghr KOマウスの肝臓でダウンレギュレーションされていることを発見した。
私たちは、定量的プロテオミクス、生化学、顕微鏡観察、細胞生物学、マウス研究を組み合わせた学際的な研究プログラムを活用し、シャペロン介在性オートファジー(CMA)に関する根本的な疑問に取り組んできました。
2. GDF8(ミオスタチン)。ミオスタチン(遺伝子記号MSTN)は、サテライト細胞(筋幹細胞)の分裂と自己再生を阻害する循環ホルモンです。したがって、ミオスタチンは筋肉のサイズ、強度、および運動後の再生を負に制限します。ミオスタチンはTGFβファミリーの分泌リガンドであり、パラクリン機能と内分泌機能の両方を持っています。MSTNのまれな遺伝性機能喪失変異を持つヒトは、乳児の頃から異常に筋肉質で強く、重大な有害な表現型を示しません。MSTNの単一ヌクレオチド多型を持つ人は、一部の筋力ベースのプロスポーツで不均衡に多く見られます。MSTNのヘテロ接合型ノックアウトマウスは、筋肉量が増加し、筋力が増加し、正常対照よりも15%長く生きます。ホモ接合型ノックアウトマウスは正常な寿命を持つが、高齢期には心機能の改善、心筋線維化の減少、骨密度の増加、血中インスリンおよびグルコース濃度の低下など、健康寿命の向上を示す兆候が見られる。
我々は、高価で特異的なMSTNエピトープを発現するウイルス様粒子(VLP)を開発しました。このVLPは、遺伝的に正常な雌雄マウスにおいて、全長MSTNタンパク質に対する免疫応答を誘導し、筋肉量の増加、握力の向上、および体脂肪量の減少をもたらします。米国特許出願中。
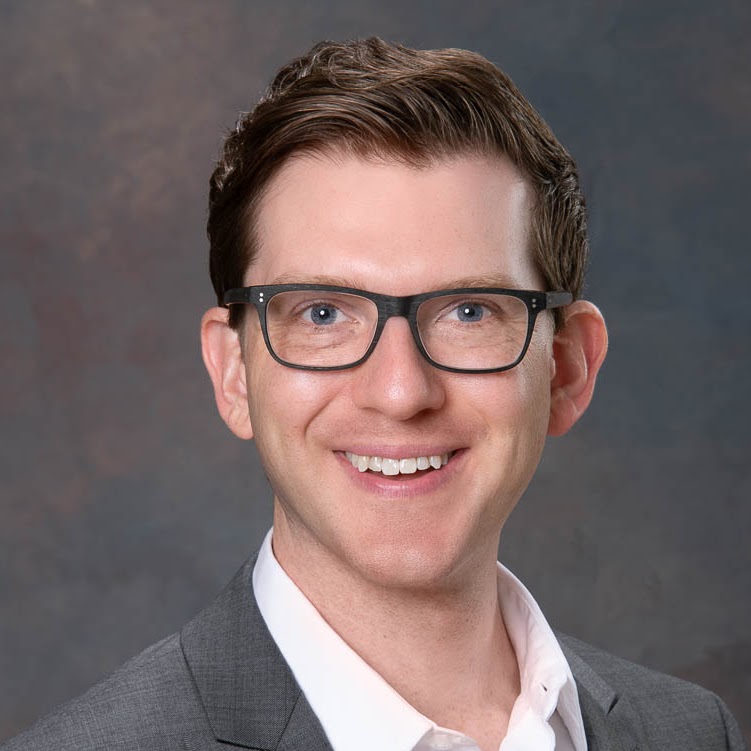
S. ジョセフ エンディコット博士
病理学科助教
メールアドレス:sendicott@salud.unm.edu
LinkedIn: https://www.linkedin.com/in/joseph-endicott-870195144/
エンディコット博士は、2016 年にイェール大学遺伝学部で博士号を取得しました。同学部では、マルティナ・ブルックナー博士のもとで、脊椎動物の臓器配置における左右非対称性の遺伝的および細胞的基盤を研究しました。その後、ミシガン大学のリチャード・ミラー研究室でポスドク研究を完了し、長寿マウス変異体におけるオートファジーの変化を研究しました。ミシガン大学で研究員として勤務した後、UNM HSC の病理学助教授に就任しました。現在は、(1) インスリン/PI3K 経路がシャペロン媒介オートファジーを制御するメカニズムと、(2) インスリンシグナル伝達が低下した長寿マウスのオートファジーの変化がプロテオームにどのように影響するかに興味を持っています。余暇には、運動、蘭の栽培、アイスクリーム作りを楽しんでいます。
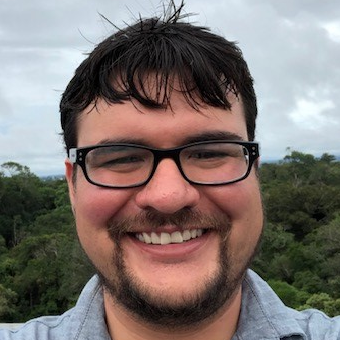
エドゥアルド・ヘルナンデス・アコスタ博士
病理学部ポストドクター
メールアドレス:ehernandezacosta@salud.unm.edu
LinkedIn: https://www.linkedin.com/in/eduardo-hernández-acosta
ヘルナンデス・アコスタ博士は、2023年にニューメキシコ州立大学で博士号を取得しました。同大学では、キャスリン・ハンリー博士の指導の下、都市の微気候がネッタイシマカによる媒介性疾患の伝播に及ぼす影響について研究しました。その後、ニューメキシコ大学のアリソン・ケル博士の研究室に加わり、ハンタウイルスの複製動態の研究に注力しました。研究テーマの転換を経て、現在はPTENの過剰発現がリソソームタンパク質に及ぼす影響、特にシャペロン介在性オートファジー基質に焦点を当てて研究しています。科学以外の分野では、熱心なゲーマーであり、自宅で音楽を演奏するミュージシャンでもあります。
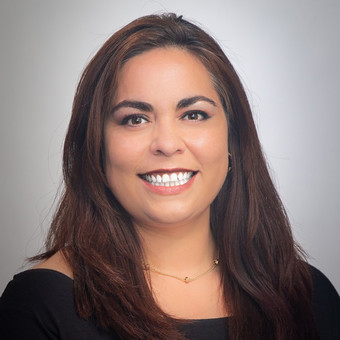
キテリア・ジャックス、MA
病理学部准研究員
メールアドレス:qsanchez@salud.unm.edu
LinkedIn: https://www.linkedin.com/in/quiteria-jacquez-b890461b/
Quiteria Jacquez 氏 (通称「Q」) は、2005 年に UNM に従業員として入社して以来、献身的な研究科学者として活躍しています。彼女は 2016 年に心理学の学士号、2022 年に油性科学の修士号を取得し、UNM の卒業生であることを誇りに思っています。この間、彼女は内科部門での炭疽菌の吸入毒性モデルや薬学部での前臨床医薬品のイメージングなど、多くの素晴らしいプロジェクトに貢献できたことを幸運に思います。最近では、Endicott 博士の研究室で、シャペロン介在性オートファジー (CMA) のメカニズムと、MAP4 依存性小胞輸送が CMA を制御する仕組みについてさらに学ぶことに興味を持っています。Q は家族と自由な時間を過ごすのが好きで、可能であれば主に屋外で遊んでいます (キャンプ、釣り、スポーツ、ハイキングなど)。
最近の出版物には以下が含まれます。
Endicott SJ、 Boynton DN Jr、Beckmann LJ、Miller RA:成長ホルモンシグナル伝達が低下した長寿マウスは、肝臓シャペロンを介したオートファジーが恒常的に亢進している、Autophagy 12: 1-14、2020年。PMID 32013718
Endicott SJ、Ziemba ZJ、Beckmann LJ、Boynton DN Jr、Miller RA:クラスI PI3Kの阻害はシャペロンを介したオートファジーを促進する、Journal of Cell Biology 219:e202001031、2020年。PMID 33048163
Endicott SJ、Monovich AC、Huang EL、Henry EI、Boynton DN Jr、Beckmann LJ、MacCoss MJ、Miller RA:ghrノックアウトマウスにおけるリソソーム標的解析により、シャペロン介在性オートファジーが核細胞質アセチルCoA産生酵素を分解することが明らかになった。Autophagy 18:1551-1571、2021年。PMID 34704522
Shi X、Endicott SJ、 Miller RA:長寿成長ホルモン受容体ノックアウトマウスおよびスネル矮小マウスにおけるmTOR複合体の制御。Aging 14 :2442-2461、2022年。PMID 35305083
Zhang KK、Burns CM、Skinner ME、Lombard DB、Miller RA、Endicott SJ:PTENはシャペロン介在性オートファジーの活性化因子であると同時に基質でもある。Journal of Cell Biology 222(9), 2023. PMID 37418003
Zhang KK、Zhang P、Kodur A、Erturk I、Burns CM、Kenyon C、Miller RA、Endicott SJ:遺伝的に異質なUM-HET3マウスでは、LAMP2Aおよびその他のシャペロン介在性オートファジー関連タンパク質は加齢に伴って減少しない。Aging 15、2023年。PMID 37315291
Endicott SJ、Miller RA:PTENはシャペロン介在性オートファジーを活性化して代謝を調節する。Autophagy 、2023年。PMID 37669771
Burns CM、Miller RA、Endicott SJ:シャペロン介在性オートファジー解析のためのリソソームサブポピュレーションのHistodenz分離。Current Protocols 4、2023。PMID 38197533
Hager M、Chang P、Lee M、Burns CM、Endicott SJ、 Miller RA、Li X:マウスにおけるPTENの全身過剰発現による抗老化表現型の再現。Geroscience 46、2024。PMID 38114855
Endicott SJ:シャペロンを介したオートファジーは老化と寿命の調節因子となる。Frontiers in Aging 5、2024年。PMID 39687864
Chen J、Berg J、Burns CM、Jia H、Li X、Miller RA、Endicott SJ、 Garcia GG:寿命延長作用を持つMEK1阻害剤トラメチニブは、シャペロン介在性オートファジーによる新規脂肪生成酵素の調節を促進する。Frontiers in Aging 6、2025。PMID 40636718
Berenger E、Maestri A、Vaz DR、Kochetkova E、Norberg E、Kaminskyy VO、Endicott SJ、Vakifahmetoglu-Norberg H. シャペロン介在性オートファジーを標的とした薬理学的戦略。Trends in Pharmacological Sciences、2026。PMID 42014216
Jacquez Q、Peabody J、Acosta EH、Chackerian B、Endicott SJ。選択的抗ミオスタチン抗体を誘導し、筋肉量と筋力を増強し、体脂肪を減少させるVLPベースの免疫原。プレプリント。PMID 41993333
ジョセフ・エンディコット博士
病理学科
フィッツホール、305号室
ニューメキシコ大学医学部
ニューメキシコ州アルバカーキ87131
Email: メール:
電話:(505)272-2318(オフィス)
ファックス:(505)272-8084
研究室: フィッツホール、332 号室
電話番号: (505)272-2563(研究室)